TransmettreDe la biologie aux modèles
Comprendre une population, puis la modéliser.
1
Qu'est-ce qu'une population ?
L'ensemble des individus d'une même espèce qui vivent au même endroit et peuvent se reproduire entre eux.
Les mouches d'un verger, les poissons d'un lac : on les compte, on les classe par sexe (femelles, mâles) et par stade de développement (juvéniles, adultes), et l'on suit comment ces effectifs changent.
En lutte biologique, la population à suivre est celle du ravageur. La question devient : comment faire baisser son effectif, durablement ?
2
Comment une population évolue-t-elle ?
Des naissances, des décès, et un milieu qui finit par limiter la croissance.
Quand les ressources abondent, chaque individu a en moyenne le même nombre de descendants, quelle que soit la taille de la population : plus elle est grande, plus elle croît vite. Puis la place et la nourriture manquent, la croissance ralentit et l'effectif se stabilise.
La courbe logistique résume ce scénario avec deux nombres : le taux de croissance r (naissances moins décès, par individu) et la capacité d'accueil K (l'effectif que le milieu peut soutenir). Faites-les varier.
Naissances moins décès, par individu et par unité de temps.
L'effectif que le milieu peut soutenir.
3
Pourquoi modéliser le vivant ?
Pour isoler un mécanisme, et tester ce que l'on ne peut pas tester au champ.
On ne peut pas relâcher des millions d'insectes pour essayer chaque stratégie, ni rendre la stérilisation imparfaite à volonté. Un modèle permet de poser la question « et si… ? » sans risque, et de repérer les seuils où tout bascule.
Un modèle n'est pas la réalité : il en garde ce qui est utile pour une question précise, et ses conclusions valent dans les limites de ses hypothèses.
4
Comment fonctionne une simulation ?
L'ordinateur avance pas à pas dans le temps, en appliquant les règles du modèle.
À chaque pas, il calcule combien d'individus naissent et meurent pendant ce court intervalle, puis met l'effectif à jour. Plus le pas est petit, plus la simulation suit fidèlement la solution exacte.
À chaque pas : N ← N + Δt × r N (1 − N/K).
10 pas de calcul. Les modèles du site utilisent un schéma plus précis (Runge-Kutta d'ordre 4) avec des pas bien plus petits.
- Solution exacte
- Simulation pas à pas
5
Qu'est-ce qu'un modèle compartimental ?
On range les individus dans des cases, et l'on décrit les flux entre elles.
Dans le modèle de fertilité résiduelle, trois cases suffisent : les mâles stériles relâchés, les femelles et les mâles sauvages. Chaque flèche est un terme d'une équation différentielle.
Le modèle suit des effectifs moyens : il est rapide à analyser mathématiquement (équilibres, seuils), mais il ne voit pas les individus.
6
Qu'est-ce qu'un modèle individu-centré ?
Chaque individu devient un agent, avec son histoire et ses règles.
Ici, chaque femelle garde en mémoire le sperme des mâles avec lesquels elle s'est accouplée. C'est indispensable pour comparer des règles d'utilisation du sperme qu'un modèle compartimental ne peut pas représenter.
Le démonstrateur ci-dessous est une version réduite au cinquantième du modèle publié : il illustre le fonctionnement, il ne remplace pas les simulations de l'article.
Règle d'utilisation du sperme
Équivaut à 10 000 individus par jour à l'échelle du modèle original.
Échelle individuelle — femelles et contenu de leur spermathèque
Jour 0 : .
- fertile
- fertile + stérile
- stérile
- non accouplée
Échelle de la population
- Larves
- Femelles
- Mâles sauvages
7
Du comportement individuel à la dynamique collective
Un détail de la vie de chaque femelle peut changer le destin de toute la population.
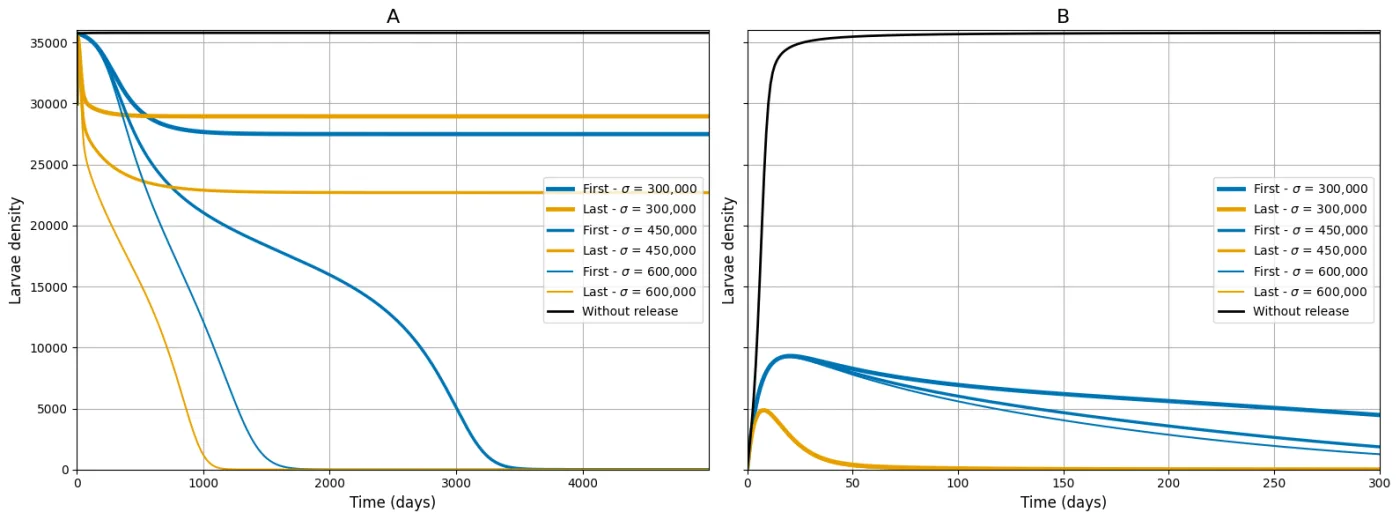
Que les femelles s'accouplent une ou plusieurs fois semble anecdotique. Pourtant, dans l'article de 2026, les accouplements multiples demandent à long terme davantage de lâchers pour contrôler la population, alors qu'à court terme ils peuvent « défertiliser » des femelles déjà accouplées à des mâles sauvages.
C'est tout l'intérêt des modèles : relier un mécanisme individuel à son effet sur la population, et montrer que cet effet dépend de l'horizon temporel.
8
Comment interpréter un résultat ?
Chercher le seuil, lire les conditions, nommer les limites.
Ce diagramme, redessiné d'après la thèse, porte en abscisse la densité de mâles stériles S présents dans le milieu, et en ordonnée la densité de femelles à l'équilibre F*. Chaque courbe est un équilibre possible : en trait plein s'il est stable, en tirets s'il est instable.
Sous la valeur critique Sc, deux issues coexistent : la population se maintient à l'équilibre stable, ou s'effondre si elle part trop bas ; l'équilibre instable joue le rôle de seuil. Au-delà de Sc, seul l'équilibre nul subsiste : la population peut être éliminée.
Interpréter, c'est dire dans quelles conditions ce seuil existe, ce qui le déplace (la fertilité résiduelle, par exemple), et ce que le modèle ne dit pas : ici, la densité de mâles stériles est supposée constante, alors que de vrais lâchers la font varier.
- Équilibre stable : la population se maintient à ce niveau.
- Équilibre instable : il joue le rôle de seuil ; une population partie trop bas s'effondre.
- Équilibre nul : la population est éliminée.
- Sc, densité critique de mâles stériles : au-delà (zone grisée), seul l'équilibre nul subsiste.
- Bifurcation nœud-col : les deux équilibres se rejoignent puis disparaissent.